الوجه السرطاني لجين طبيعي: ستيهلين وفارموس وبيشوب والمنشأ الخلوي للجين الورمي، 1976
في هذا المقال
الوجه السرطاني لجين طبيعي: ستيهلين وفارموس وبيشوب والمنشأ الخلوي للجين الورمي، 1976
رأينا في اليوم 159 فكرة إعطاء الدواء بعد الجراحة؛ واليوم ينقلب السؤال: من أين يأتي ما يبدأ السرطان؟ في اليوم 97 رويْنا ساركوما الدجاج لراوس عام 1911 وذكرنا الجين src؛ وبقي سؤال ذلك اليوم مفتوحًا: هل كان الجين الذي يجعل فيروس راوس سرطانيًا ملكًا للفيروس، أم أخذه الفيروس من مكان ما؟ كما وعدتُ في خانة «غدًا» من اليوم 159، راجعتُ اليوم في المصادر بيانات مقالة Nature وتواريخها وتعليل جائزة نوبل 1989. والجواب هو: لم يكن الجين السرطاني اختراعًا فيروسيًا، بل نسخة من جين يعيش في خلايا الدجاجة نفسها.
من أين أخذ الفيروس هذا الجين؟
بحلول ستينيات القرن العشرين كان فيروس ساركوما راوس نظامًا تجريبيًا معروفًا. وبحسب تعليق فوغت عام 1988، أظهر هانافوسا وزملاؤه عام 1963 أن فيروس راوس معيب، أي لا يعطي ذرية معدية لكنه قادر على تحويل الخلية؛ وكان هذا يوحي بأن التحويل لا يحتاج إلى جميع الجينات وأن جينوم الفيروس قد يحمل «معلومة سرطانية» خاصة. ويكتب فوغت أن هذا استبق اكتشاف الجينات الورمية. وبحسب الصفحة التاريخية للمكتبة الوطنية الأمريكية للطب (NLM)، جرى عام 1970 تحديد الجين الورمي لفيروس راوس، SRC؛ ولا تقول الصفحة من فعل ذلك.
وفي عام 1969 نشر روبرت هيوبنر وجورج تودارو من NIH في PNAS (المجلد 64، الصفحات 1087-1094) فرضية «الفيروجين-الجين الورمي»: تحمل خلايا الفقاريات معلومة إنتاج فيروسات RNA من النوع C؛ وتشمل هذه المعلومة جينات ورمية خلوية مسؤولة عن التحويل؛ وتوقظ المواد المسرطنة والإشعاع والشيخوخة هذه الجينات الفطرية فتؤدي إلى السرطان. وبحسب تقدير هيوبنر نفسه عام 1981 كانت الفكرة مثيرة للجدل منذ البداية. ولذلك لا أعرضها بوصفها «مؤكدة»، بل بوصفها «سابقة اختُبر جزء منها لاحقًا»؛ وأكتب فيما يلي ما بقي منها وما سقط، كلًّا على حدة.
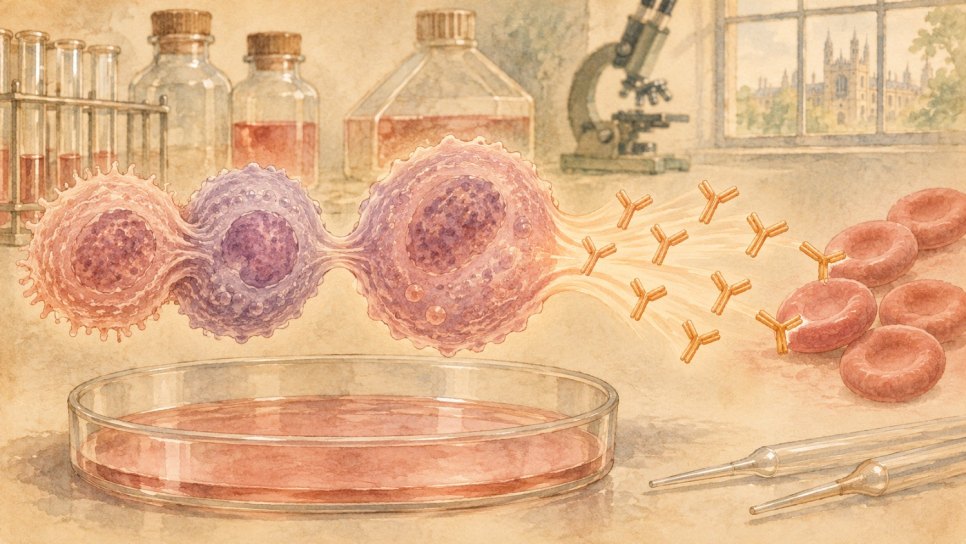
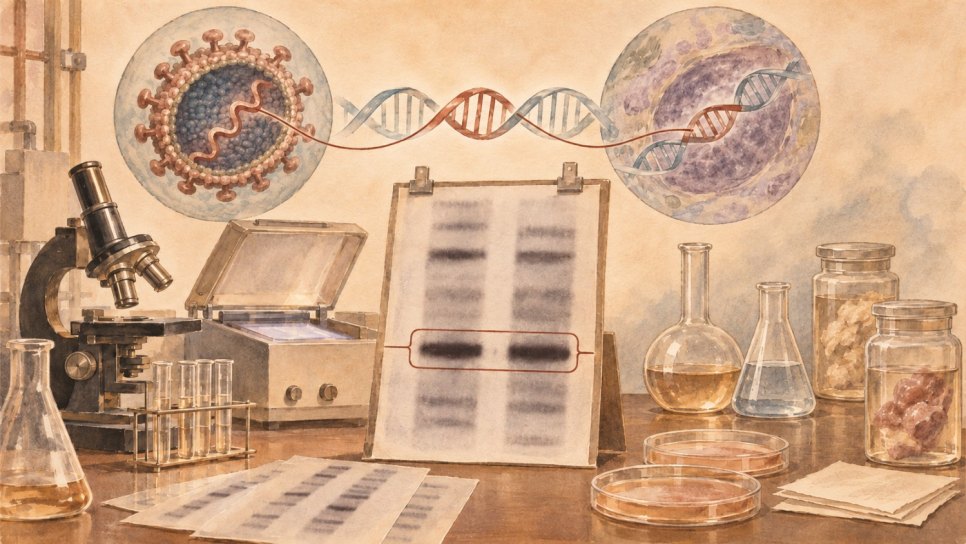
وبحسب محاضرة بيشوب في نوبل عام 1989، بدأت مجموعته العمل على src الخلوي في 1972-73؛ ولم يكن الهدف البحث عن منشأ الجينات الورمية، بل اختبار فرضية الجين الورمي الفيروسي. وكان المفتاح التقني طفرات فيروس راوس عند بيتر فوغت التي فقدت القدرة على التحويل (ويؤرخ فارموس عزلها بعام 1971): كانت منطقة src غائبة فيها. وبحسب محاضرة فارموس، اختار دومينيك ستيهلين، الذي ذُكر عنوانه فيلجويف في فرنسا، هذه المنطقة الغائبة بعينها، وصنع منها مسبار DNA مشعًّا (cDNA)، وحضنه مع DNA الدجاج الطبيعي.
أثر «src» في DNA الدجاج الطبيعي
نُشرت مقالة ستيهلين وفارموس وبيشوب وفوغت في Nature بتاريخ 11 مارس 1976: «DNA related to the transforming gene(s) of avian sarcoma viruses is present in normal avian DNA» (المجلد 260، الصفحات 170-173). قرأتُ تاريخ الاستلام في المجلة 10 نوفمبر 1975 وتاريخ القبول 2 يناير 1976. صُنع المسبار من سلالة Prague-C ومثّل نحو 16 بالمئة من الجينوم (نحو 1 600 نيوكليوتيد). وارتبط بـ DNA الدجاج والسمّان والديك الرومي والبط بنحو 45-52 بالمئة، وبـ DNA الإيمو بنسبة 24 بالمئة، وبـ DNA غدة التيموس من الفأر والعجل بأقل من 5 بالمئة. وكانت درجة انصهار الثنائي بين DNA الخلية والمسبار 77 °C في الدجاج و81 °C في الجينوم الفيروسي المدمج؛ وهذا الفرق يوافق نحو 3 بالمئة من القواعد غير المتطابقة، ونحو 5-8 بالمئة في الطيور الأخرى. وكتب المؤلفون أن التسلسل المشابه موجود في الجينوم الأحادي الصيغة الصبغية بنسخة واحدة أو بضع نسخ، وأنه يبدو نشأ وانفصل خلال تنوّع أنواع الطيور، وأن الجين الفيروسي المحوِّل قد يكون أتى كليًّا أو جزئيًّا من جينوم الدجاجة (أو من نوع قريب)؛ وكانت وظيفة التسلسل مجهولة، وربما كانت بنيوية أو تنظيمية.
قرأتُ هذا بأداة تلخيص؛ ولم أطّلع مباشرة على الجداول والأشكال المطبوعة في المقالة، والأرقام هي القيم التي نقلها هذا الملخص.
الجين الورمي الأولي (بروتو-أونكوجين)
جين في الخلية الطبيعية يشارك في تنظيم النمو والانقسام؛ وقد يدفع شكله المتغير أو المفرط النشاط الخلية نحو السرطان. يُسمّى الشكل الذي يحمله الفيروس v-src، والشكل الخلوي الطبيعي c-src. وبحسب بيشوب كان المصطلح في البداية «الجين الورمي الخلوي»؛ فسمّاه «proto-sarc» واختار الاسم تحيةً لفكرة تيمين عن الفيروس المدمج (اليوم 149)؛ ثم استقر «بروتو-أونكوجين» سريعًا. وبحسب نص المحاضرة المفرغ، عدّ بيشوب لاحقًا البادئة «بروتو» مدعاة إحراج، لأنها تُفهم «نموذجًا أوليًا» لا «سلفًا» (خلاصة مفهومية): فالجين لم يعد جينًا سرطانيًا، بل جينًا طبيعيًا. وهذا تعريف مبسّط.
ما كان استنتاجًا وما كان إثباتًا
كانت تجربة 1976 تجربة تهجين؛ وكانت كافية للقول إن للجين الورمي الفيروسي نظيرًا في جينوم الدجاج الطبيعي. أما جملة «أخذ الفيروس هذا الجين من الخلية» فكانت استنتاجًا. ويصف بيشوب في المحاضرة السطر الختامي لكتابة المجموعة، الذي قال إن الجين ربما يشارك في تنظيم النمو الطبيعي، بأنه «تبجّح محض»: إذ لم يكونوا آنذاك واثقين حتى من أن src الخلوي جين كامل. وفي العامين التاليين ترسّخ الاستنتاج: كان الجين يُنسخ في الخلايا الطبيعية، وكان ناتجه بروتين كيناز. وبحسب بيشوب، تبيّن على نحو غير متوقع أن ركيزة هذا الكيناز هي التيروزين، وصار src أول مثال على بروتين تيروزين كيناز. وأظهر الاستنساخ وتحديد التسلسل أن الشكلين الخلوي والفيروسي قريبان قرابة وثيقة، وأن طفرات دقيقة بينهما تحوّل الشكل الفيروسي إلى جين ورمي. وبحسب صفحة NLM، وجدت ديبورا سبكتور في مختبر فارموس وبيشوب الجين الورمي الأولي src في الأسماك وفي كثير من الثدييات؛ ولا تذكر الصفحة تاريخًا.
عند هذه النقطة انقسمت فكرة هيوبنر وتودارو إلى نصفين. بقي الجزء الصحيح: في داخل الخلايا جينات قريبة من الجينات الورمية الفيروسية. وسقط الجزء الآخر: لم تكن هذه الجينات معلومة فيروسية نائمة موروثة. وبحسب صفحة NLM، وجد فارموس وبيشوب الفرضية معيبة في نقطتين: الجينات الورمية الأولية جزء من الآلية الخلوية الطبيعية، وتوجد في خلايا لا أثر فيها لإصابة فيروسية. وتصل محاضرة فارموس في نوبل إلى النتيجة نفسها من طريق آخر: لمّا أظهر المسبار أن تسلسلات الدجاج محفوظة في طيور أخرى، اتضح أن هذا الجين ليس «الفيروجين» الموروث الذي توقعه هيوبنر وتودارو.
وتجمع هذه القصة «ثلاثية العلل» التي بنيناها في السلسلة: قال راوس (اليوم 97) إن السرطان قد ينتقل بفيروس، وقال بوفيري (اليوم 98) إن خللًا في المادة الوراثية قد يفضي إلى السرطان، وقال ياماغيوا (اليوم 99) إن مادة من الخارج قد تثيره. وهدمت تجربة ستيهلين وفارموس وبيشوب الجدار بين «الفيروس» و«جينات الخلية نفسها»: كان الجين السرطاني للفيروس نسخة متغيرة من جين الخلية نفسها. والمصادر التي تستند إليها هذه المقالة لا تقول إن التجربة أثبتت فرضية بوفيري؛ وأنا لا أقول ذلك أيضًا. إنما اتسع السؤال بمثال أظهر أن ثنائية «العلة في الخارج أم في الداخل» باب ضيق جدًا.
الحدود والثمن
هذه تجربة على الدجاج. وبحسب محاضرة فارموس، ارتبط مسبار src في شروط أخف بجينوم جميع الفقاريات، ومنها الإنسان، وكان ذلك يطرح فقط احتمال أن تؤدي الجينات الورمية الأولية الفيروسية القهقرية دورًا في سرطان الإنسان؛ أي «احتمالًا». ويكتب فارموس في المحاضرة نفسها أنهم لم يستطيعوا القول ما الفائدة التي يقدمها src للكائنات أو الخلايا الطبيعية. ويشير بيشوب أيضًا في 1989 إلى أن src الخلوي لم يُربط بسرطان الإنسان ربطًا مقنعًا، وأن أهميته تكمن في المبدأ العام أكثر.
ويحافظ البيان الصحفي لنوبل على التوازن نفسه: قد يكون للفيروسات القهقرية دور محدود في السرطان الطبيعي لدى الإنسان؛ والمثال البشري المعروف هو الأورام اللمفاوية المرتبطة بـ HTLV-1 في اليابان. ويعدّد البيان أمثلة بشرية أخرى: erbB المرتفع في بعض الأورام الدبقية، ونشاط neu المرتفع في بعض سرطانات الثدي، وانتقال myc في كثير من أورام بوركيت اللمفاوية (لبوركيت اليوم 136، وللانتقال الصبغي اليوم 155). ويكتب بيشوب أيضًا أن كثيرًا من الكلام الكبير في أبحاث السرطان المبكرة تبيّن أنه مبالغ فيه، وأن العلاج بإصلاح الجينات بعيد، وأن الأدوية الموجهة إلى البروتينات أقرب. لم يعطِ الاكتشاف نفسه علاجًا؛ والطريق إلى الأدوية موضوع الأيام التالية.
ما بقي
- فكرة أن الجينات السرطانية موجودة في الجينوم الطبيعي بصورة جينات ورمية أولية
- إدراك أن إشارة نمو الخلية يمكن دراستها عبر الكينازات (src، تيروزين كيناز)
- طريقة البحث في DNA الطبيعي بمسبار فيروسي (التهجين)
ما سقط أو ضعف
- افتراض أن الجين الورمي الفيروسي اختراع الفيروس نفسه
- نموذج «الفيروجين النائم الموروث» عند هيوبنر وتودارو، على الصورة التي وُصف بها
- الانطباع بأن الفيروس حاسم في كل مكان في منشأ السرطان
من الفرضية إلى نوبل: 1969-1989. يمتد المحور من 1965 إلى 1995. الرموز الخضراء تواريخ مؤكدة في أكثر من سجل أو في السجل الأصلي؛ والرموز والأشرطة الزرقاء تعتمد على مصدر واحد أو هي مدى زمني؛ والشريط الأصفر يبيّن تاريخًا تتعارض فيه المصادر. أما التواريخ المعروفة بالسنة فقط فقد وُضعت في منتصف السنة.
عائلة الجينات الورمية الأولية ومجموعة تركية
ليس عندي رابط متحقق منه بين بيشوب وفارموس وتركيا، ولا أصنع رابطًا كهذا. ولمثال تركي على منطق الجينات الورمية الأولية نظرتُ في ملخص أطروحة في قاعدة العلوم المفتوحة لمجلس التعليم العالي: «تحديد طفرات الجينين H-ras وK-ras في منطقتي الكودون 12 والكودون 61 لدى المريضات التركيات المصابات بسرطان الثدي» (العنوان التركي: Meme kanserli türk kadın hastalarda kodon 12 ve kodon 61 bölgelerindeki H-ras, K-ras gen mutasyonlarının belirlenmesi). لا تُظهر صفحة السجل المؤلف ولا الجامعة ولا السنة ولا المشرف؛ وتقول إن عينات الدم جاءت من قسمي الأشعة والباثولوجيا في كلية الطب بجامعة أنقرة.
وبحسب الملخص، فُحصت 100 مريضة بسرطان الثدي و100 شخص سليم، وعُزل DNA من عينات الدم، وبُحث عن الطفرات النقطية بتقنية PCR-RFLP. لم تُوجد أي طفرة في مناطق H-ras الكودون 12 وH-ras الكودون 61 وK-ras الكودون 12. يذكر العنوان الكودونين 12 و61 لكل من H-ras وK-ras، بينما تعدّد جملة النتيجة ثلاث مناطق؛ ولم أستطع تفسير هذا الفرق. ويقول الملخص إن أنماط جينات ras حُددت في مجتمعات أخرى، وإن بحثًا مماثلًا لم يُجرَ في المجتمع التركي. ولم أستطع أن أفهم من الملخص هل استُخدم نسيج الورم أم لا؛ ولذلك لا أحكم على ما تقوله النتيجة عن طفرات ras في الأورام. قرأتُ فقط الملخص في صفحة السجل، لا النص الكامل للأطروحة. وسنعود إلى RAS في تاريخه الخاص، في مقالة منفصلة.
من 1911 إلى اليوم
ما تم التحقق منه وما بقي غير مؤكد
- اليوم 158: لم يُكتب بعدُ يوم كولر وميلشتاين؛ والوعد الوارد في خانة «غدًا» من اليوم 157 لم يُنفَّذ.
- بيانات Nature: Stehelin D, Varmus HE, Bishop JM, Vogt PK. Nature 1976;260:170-173, doi:10.1038/260170a0. مدى الصفحات في مصدرين هو 170-173 (صفحة doi في Nature؛ وتعليق «Citation Classic» لفوغت عام 1988)، لكنه ظهر في أداة تلخيص نص المقالة «170-172 (مستنتَج من إشارات الصفحات)». واستخدمتُ 170-173. أما التواريخ 11 مارس 1976 و10 نوفمبر 1975 (الاستلام) و2 يناير 1976 (القبول) فمن ترويسة المقالة وحدها كما قرأتها أداة التلخيص؛ ولم تُظهر صفحة Nature تواريخ.
- تعارض في التاريخ: يكتب البيان الصحفي لنوبل أن النتيجة نُشرت عام 1976، ويكتب في الوقت نفسه أن الفائزين «أظهروا ذلك عام 1975». ولما كانت المقالة قد بلغت المجلة في 10 نوفمبر 1975، فإن إجراء التجربة في 1975 معقول؛ لكنه استنتاجي أنا.
- أرقام التهجين: 45-52 بالمئة، و24 بالمئة للإيمو، وأقل من 5 بالمئة في الثدييات، وقيم Tm، و3 بالمئة مقابل 5-8 بالمئة من عدم التطابق، هي قيم نقلتها أداة التلخيص من المقالة؛ ولم أطّلع مباشرة على الجداول الأصلية.
- المؤسسات: قرأت أداة التلخيص في ترويسة المقالة «فيلجويف، فرنسا» لستيهلين وقسم UCLA لفوغت؛ ولم أتحقق من ذلك باستقلال ولم أكتب تفصيلًا آخر عن المؤسسات.
- 1970 و1971: تقول صفحة NLM إن SRC حُدد عام 1970 لكنها لا تسمّي من حدده؛ ولم أستطع التحقق من الاسم الذي يصح ذكره، فلم أذكر أحدًا. وتاريخ طفرات فوغت 1971 من محاضرة فارموس في نوبل؛ وتكتب صفحة NLM أن فارموس صمّم المسبار عام 1971.
- هيوبنر وتودارو: بيانات PNAS 1969;64:1087-1094 من تعليق «Citation Classic» لهيوبنر عام 1981. والقول إن الفرضية كانت مثيرة للجدل منذ اليوم الأول وإنها «ثبتت» لاحقًا هو تقدير هيوبنر نفسه، لا تأكيدًا مستقلًا. وحكم «معيبة» يستند إلى تقدير فارموس وبيشوب في صفحة NLM.
- محاضرة بيشوب: قُرئت نصًّا مفرغًا آليًّا فيه أخطاء (مثل «sarc»)؛ ولذلك نقلت المصطلح واقتباس «تبجّح محض» خلاصةً مفهومية. والأرقام متعارضة كذلك: في النص المفرغ نفسه أكثر من عشرين جينًا ورميًّا فيروسيًّا قهقريًّا وأكثر من ستين جينًا ورميًّا أوليًّا، وفي محاضرة فارموس أكثر من أربعين جينًا خلويًّا، وفي مصدر ثانوي أكثر من أربعين جينًا ورميًّا للفيروسات القهقرية؛ فلم أكتب رقمًا.
- تاريخ راوس: يكتب البيان الصحفي لنوبل أن راوس اكتشف الفيروس «عام 1916»؛ ورويْنا في اليوم 97 منشور 1911. ولم أستطع الجمع بينهما في هذه المقالة؛ وأبقيت 1911 تاريخًا داخل السلسلة.
- ستيهلين ونوبل: تكتب محاضرة فارموس أن المسبار أعدّه ستيهلين. وتذكر بوابة علمية باسكية أن ستيهلين رأى أنه يستحق الجائزة وأن الأوساط العلمية الناطقة بالإنجليزية والفرنسية قيّمت دوره تقييمًا مختلفًا؛ وهذا المصدر الثانوي الوحيد. ولم أتحقق من هذا الخلاف ولا أصدر فيه حكمًا.
- سبكتور: العثور على src في الأسماك والثدييات من صفحة NLM، بلا تاريخ ولا بيانات نشر؛ فلم أكتب سنة.
- ادعاء «الأول»: يسمّي مصدر هذه المقالة «أول اكتشاف لجين ورمي»؛ ولم أكتب ذلك. وعبارة «أول مثال» على التيروزين كينازات لبيشوب، ونُقلت كما هي.
- الأطروحة التركية: قُرئ ملخص السجل فقط؛ المؤلف والجامعة والسنة والمشرف غير موجودين في الصفحة؛ ولم يُفسَّر الفرق في الكودون بين العنوان وجملة النتيجة؛ وعبارة عينة الدم لا توضح هل استُخدم نسيج الورم.
في البحث عن سبب سرطان عنق الرحم: تسور هاوزن وأثر HPV، 1976
رأينا اليوم أن الجين السرطاني جاء من داخل الخلية. وغدًا نعود إلى جبهة «السبب» في سرطان عنق الرحم: رويْنا في اليوم 106 فيروس الورم الحليمي للأرانب عند شوب، وفي اليوم 103 مسحة بابانيكولاو، وفي اليوم 93 فيرتهايم. وقبل الكتابة سأتحقق من بيانات عمل هارالد تسور هاوزن في السبعينيات عن صلة فيروس الورم الحليمي البشري (HPV) بسرطان عنق الرحم وتاريخه (يرد في الخطة بوصفه 1976)، ومن الاكتشافات اللاحقة عن HPV-16 وHPV-18 وجائزة نوبل 2008، مفرّقًا بين الفرضية والإثبات.
ملاحظة الكاتب: أكثر ما حرصت عليه في هذه المقالة أن أُبقي منفصلًا ما أثبتته تجربة 1976 (للجين الورمي الفيروسي نظير في جينوم الدجاج) وما كان استنتاجًا (أخذ الفيروس الجين من الخلية). وحرصي الثاني ألا أعمّم اكتشاف الدجاج على سرطان الإنسان، وألا أحكم في الخلاف حول استبعاد ستيهلين من الجائزة اعتمادًا على مصدر ثانوي واحد فقط.
المصادر والقراءة الإضافية
- Stehelin D, Varmus HE, Bishop JM, Vogt PK. DNA related to the transforming gene(s) of avian sarcoma viruses is present in normal avian DNA. Nature 1976;260:170-173. doi:10.1038/260170a0 (صفحة doi في Nature ونص المقالة، قُرئا بأداة تلخيص؛ ولم تُراجَع الجداول المطبوعة).
- Huebner RJ, Todaro GJ. Oncogenes of RNA tumor viruses as determinants of cancer. Proc Natl Acad Sci USA 1969;64:1087-1094 (البيانات من تعليق «Citation Classic» لهيوبنر عام 1981؛ ولم تُقرأ المقالة نفسها).
- Bishop JM. Nobel Lecture, 1989 (قُرئت نصًّا مفرغًا آليًّا؛ في النص أخطاء؛ نُقلت خلاصةً مفهومية).
- Varmus HE. Nobel Lecture, 1989, nobelprize.org (قُرئت بأداة تلخيص).
- The Nobel Prize in Physiology or Medicine 1989. nobelprize.org: صفحة الجائزة والبيان الصحفي (التعليل: «for their discovery of the cellular origin of retroviral oncogenes»).
- National Library of Medicine. Retroviruses and the Genetic Origins of Cancer, 1970-1993. profiles.nlm.nih.gov (ملخص تاريخي؛ بعض التفاصيل بلا تواريخ؛ مصدر ثانوي).
- Vogt PK. تعليق Citation Classic على «Avian tumor viruses» (Adv Virus Res 1965;11:293-385). Current Contents، 1988، garfield.library.upenn.edu (لمدى صفحات مقالة 1976).
- Nobel Prize 1989. zientzia.eus (بوابة علمية باسكية؛ مصدر ثانوي؛ لأقوال ستيهلين عن الجائزة).
- تحديد طفرات الجينين H-ras وK-ras في منطقتي الكودون 12 والكودون 61 لدى المريضات التركيات المصابات بسرطان الثدي (العنوان التركي: Meme kanserli türk kadın hastalarda kodon 12 ve kodon 61 bölgelerindeki H-ras, K-ras gen mutasyonlarının belirlenmesi). أطروحة، acikbilim.yok.gov.tr (قُرئ ملخص صفحة السجل؛ المؤلف والسنة غير موجودين في الصفحة).
- Mukherjee S. The Emperor of All Maladies: A Biography of Cancer. New York: Scribner؛ 2010 (سياق عام؛ ولم يُعَد قراءة الجزء المعني لهذه المقالة).
هذه المقالة هي اليوم 160 من سلسلة «تاريخ السرطان في 365 يومًا»، وتعرض اكتشاف المنشأ الخلوي للجين الورمي قراءةً تاريخية. وهي محتوى تاريخي-عام؛ وليست توصية تشخيصية أو علاجية. استشر طبيبك في قرارات العلاج. المصادر جرى التحقق منها؛ أما التفاصيل المعتمدة على مصدر ثانوي واحد فقط، أو على ملخص فقط، أو على نص تعذرت قراءته، فمشار إليها في ملاحظات التحقق من الحقائق.
هل كان هذا المقال مفيدًا لك؟
تساعدنا ملاحظاتك على تحسين المحتوى.