Doudna ve Ekibi CRISPR Tarihini Baştan Yazıyor: Bakteriler İcat Etmedi, Ödünç Mü Aldı?
CRISPR'ı bakteriler icat etmedi: VIPR ve RNA rehberli bağışıklığın viral kökeni
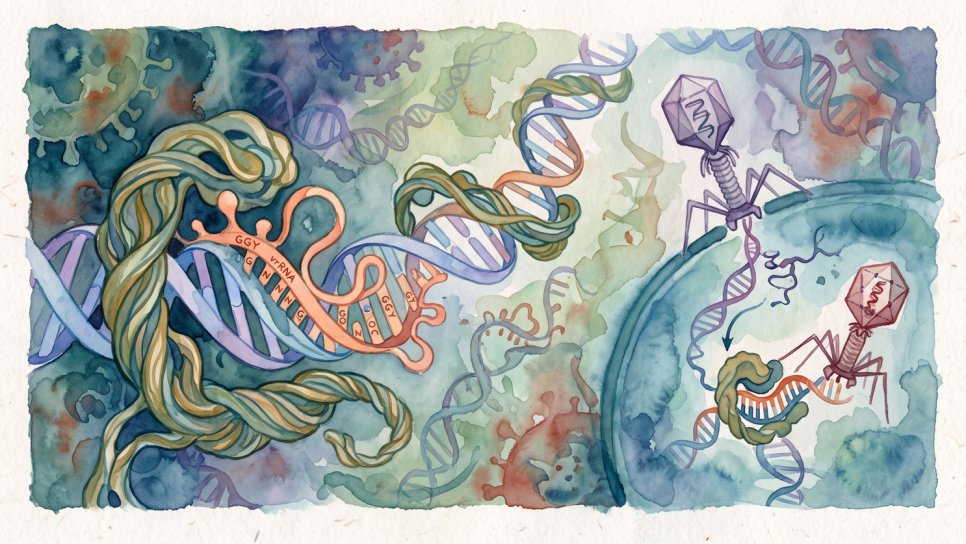
CRISPR'ın hikâyesi on beş yıldır aynı anlatılıyordu: bakteriler, kendilerine saldıran virüslere karşı bir bağışıklık sistemi geliştirdi; biz de onu ödünç alıp gen düzenleme aracına çevirdik. 17 Eylül 2026'da Science dergisinde yayımlanan iki makale bu hikâyenin başlangıcını değiştiriyor. Jennifer Doudna ve ekibi, CRISPR'dan daha eski görünen ve virüslerin birbirine karşı kullandığı bir sistem buldu: VIPR. Bulgu doğruysa, RNA rehberli bağışıklık bakteri–virüs savaşında değil, virüs–virüs savaşında doğmuş ve bakteriler onu sonradan devralmış olabilir.
Bu yazıda üç şeyi ayrı tutacağız: makalelerin ne gösterdiği, ne önerdiği ve bu önerinin ne kadar sağlam olduğu. Özellikle sonuncusu önemli, çünkü buradaki en çarpıcı iddia — "virüsler önce geldi" — deneysel değil, filogenetik bir çıkarımdır ve tartışmaya açıktır.
| 1. Araştırma makalesi | Yoon PH, Loi KJ, Zhang ZT, ve ark., Doudna JA. "A noncontiguous code for RNA-guided DNA recognition at the origin of CRISPR-Cas" · Science 2026;393(6817):1230-1235 |
| 2. Araştırma makalesi yapı çalışması |
Yoon PH, Docter TA, Zhang ZT, ve ark., Doudna JA. "VIPR RNA-guided DNA recognition by noncontiguous geometric triplex formation" · Science 2026;393(6817):1236-1240 |
| Eşlik eden yorum | Bravo JPK. "A viral origin for RNA-guided immunity" · Science 2026;393(6817):1187-1188 |
| Kıdemli yazar | Jennifer A. Doudna — CRISPR-Cas9'un gen düzenleme aracı olarak geliştirilmesindeki çalışmalarıyla 2020 Nobel Kimya Ödülü sahibi |
| Sistemin adı | VIPR — Viral Interference Programmable Repeat (Viral Girişim Programlanabilir Tekrar) |
| Bileşenleri | Vipr proteini + vrRNA adı verilen rehber RNA'lar |
Önce hatırlatalım: CRISPR nasıl çalışır?
Bakteriler virüslerle sürekli savaş halindedir. CRISPR-Cas, bakterinin bu savaşta kullandığı bir tür kazanılmış bağışıklık sistemidir ve üç adımda işler:
1. Hafıza: Bir virüs saldırdığında bakteri, virüsün DNA'sından küçük bir parça keser ve kendi genomundaki "CRISPR dizisi" denen arşive yapıştırır. Bu, bir nevi arananlar listesidir.
2. Rehber: Bu arşivden RNA kopyaları üretilir. Her kopya, o virüsün DNA'sına karşılık gelen bir rehber RNA'dır.
3. İnfaz: Rehber RNA, Cas adı verilen bir proteine bağlanır. Protein-RNA ikilisi hücrede dolaşır; rehber RNA ile eşleşen bir DNA dizisi bulduğunda protein o DNA'yı keser.
Gen düzenlemede kullandığımız şey tam olarak bu üçüncü adımdır. Rehber RNA'yı biz yazarsak, makas istediğimiz yeri keser. Nobel Ödülü'ne giden fikir buydu.
| Sınıf 1 | Sınıf 2 | |
|---|---|---|
| Yapı | Çok alt birimli kompleks — birçok protein bir araya gelip rehber RNA etrafında bir yapı oluşturur | Tek büyük protein rehber RNA ile çalışır |
| Örnekler | Cascade, Csm, Cmr; RAMP ailesi proteinleri (Cas5, Cas6, Cas7) | Cas9, Cas12 |
| Doğadaki yaygınlığı | Çok daha yaygın (bakteri ve arkelerin çoğunda) | Daha seyrek |
| Laboratuvardaki yeri | Az kullanılır | Gen düzenlemenin tamamı buradan gelir |
| Bilinen kökeni | Belirsizdi — bu makalelerin konusu | Hareketli genetik elemanlardan: TnpB → Cas12, IscB → Cas9 |
Bu tablodaki son satır, yazının en sık atlanacak ayrıntısıdır ve baştan netleştirmek gerekir. Yeni makaleler Sınıf 1 CRISPR sistemlerinin kökeni hakkındadır. Cas9 ve Cas12'nin — yani gen düzenlemede kullandığımız araçların — kökeni başka bir hikâyedir ve bu çalışmayla ne doğrulanmış ne çürütülmüştür. Eşlik eden yorumun alt başlığı da bunu açıkça söylüyor: "Kadim viral savaş, modern sınıf 1 CRISPR bakteriyel savunma sistemlerinin kökeninde olabilir."
Yani "CRISPR'ın kökeni bulundu" ifadesi, CRISPR'ın bir kolunun kökeni anlamına gelir.
VIPR nedir ve CRISPR'dan nasıl ayrılır?
| CRISPR-Cas | VIPR | |
|---|---|---|
| Kimin sistemi? | Bakteri ve arkelerin, virüslere karşı | Ağırlıklı olarak virüslerin, rakip virüslere karşı |
| Ne yapar? | Hedef DNA'yı keser | Kesmez — DNA'ya bağlanır ve o genin okunmasını (transkripsiyonu) fiziksel olarak engeller |
| Protein ailesi | Cas proteinleri; Sınıf 1'de RAMP ailesi | Vipr — RAMP ailesinin ilkel bir üyesi; tüm CRISPR RAMP'larından daha erken dallanıyor |
| Rehber RNA | Hedefle kesintisiz baz eşleşmesi yapar | Kesintili (noncontiguous) — her üçüncü bazı atlar |
| PAM gerekli mi? | Evet — hedefin yanında belirli bir kısa dizi bulunmak zorundadır | Hayır — hiçbir komşu dizi şartı yoktur |
| Hafıza mekanizması | Var (Cas1 ile yeni diziler arşive eklenir) | Bilinen bir hafıza modülü tanımlanmamıştır |
İki fark özellikle önemli.
Birincisi: VIPR kesmiyor. Vipr proteininin kendisinin nükleaz (DNA kesme) etkinliği yoktur. Yaptığı şey hedef DNA'ya oturup o bölgenin okunmasını engellemektir. Bazı VIPR tiplerinde yardımcı vap genleri bulunur ve bunların bir kısmı nükleaz ya da helikaz kodlar — ama kesme işi ana proteinin işi değildir.
İkincisi: VIPR'ın PAM'e ihtiyacı yok. CRISPR sistemlerinde hedefin hemen yanında PAM adı verilen kısa bir dizi bulunmak zorundadır; bu, sistemin "kendi kendini kesmesini" önleyen bir güvenlik kilididir ama aynı zamanda hedeflenebilecek yerleri sınırlar. Makalede bu durum açıkça belirtiliyor: hedef tanıma, atlama kuralı dışında hiçbir dizi kısıtı gerektirmiyor. Yapı çalışmasına göre Vipr proteini hedef DNA ile hiçbir baza özgü temas kurmuyor; özgüllüğün tamamı rehber RNA tarafından belirleniyor.
Kesintili kod: her üçüncü harfi atlayan bir alfabe
Makalelerin asıl yeniliği burada. Bugüne kadar bilinen bütün RNA rehberli sistemlerde mantık aynıydı: rehber RNA, hedef DNA ile harf harf, kesintisiz eşleşir. VIPR bunu yapmıyor.
vrRNA'nın yapısı
VIPR'ın rehber RNA'sı (vrRNA), art arda tekrarlanan bir kalıptan oluşur. Her tekrar beş nükleotitliktir ve iki parçadan kuruludur:
| Parça | İçerik | İşlevi |
|---|---|---|
| GGY motifi sabit kısım |
İki guanin + bir pirimidin | Hedefi belirlemez. Yapısal iskelet görevi görür; proteinin "başparmak" bölgesi tarafından sarmalın dışına itilir |
| NN dinükleotidi değişken kısım |
Herhangi iki baz | Hedefi belirleyen tek kısım budur. Hedef DNA ile baz eşleşmesi yapar |
Bir vrRNA'da bu tekrardan 9 ila 16 tane bulunur. Yani rehber RNA, "sabit–değişken–sabit–değişken…" şeklinde ilerleyen bir zincirdir.
Hedefte ne oluyor?
Her beş nükleotitlik RNA tekrarı, hedef DNA'nın üç bazına karşılık gelir. Bu üç bazın ikisi rehber RNA ile eşleşir; üçüncüsü hiç okunmaz — fiziksel olarak sarmaldan dışarı itilip proteinin içindeki bir cebe yerleştirilir.
Sonuç şudur: VIPR, hedef DNA'yı "iki oku, bir atla" ritmiyle tarar. Kesintisiz bir dizi okumaz; delikli bir desen okur. Makalelerin "kesintili kod" (noncontiguous code) dediği şey budur ve doğada daha önce tanımlanmamış bir bilgi kodlama mantığıdır.
| Değer | |
|---|---|
| Tekrar sayısı | 9–16 |
| Kapsanan DNA uzunluğu (3 baz × tekrar) | yaklaşık 27–48 baz çifti |
| Gerçekten okunan baz sayısı (2 × tekrar) | 18–32 baz |
| Karşılaştırma: Cas9 rehber RNA'sı | 20 bazın tamamını kesintisiz okur |
Yukarıdaki hesap bizimdir, makalelerin değil. Makaleler tekrar sayısını ve RNA–DNA oranını veriyor; bu sayılardan hedef uzunluğunu biz türettik. Yazarlar özgüllüğü Cas9 ile sayısal olarak karşılaştırmamıştır.
Dikkat çekici olan şu: uzun bir vrRNA'da okunan baz sayısı (32'ye kadar) Cas9'un okuduğundan (20) fazladır — ama bu bazlar 48 baz çiftlik bir alana yayılmıştır. Yani VIPR daha geniş bir alana bakar, o alanın üçte birini görmez, ama gördüğü kısım daha uzundur.
Üçlü sarmal: yapının kendisi
İkinci makale, kriyo-elektron mikroskobuyla bu işin nasıl olduğunu gösteriyor. Sonuçlar, tek bir proteinin DNA'ya oturmasından çok farklı bir tabloyu ortaya koyuyor:
- Vipr proteinleri rehber RNA boyunca dizilerek sağ el sarmalı biçiminde bir filament oluşturur — yani tek bir makas değil, bir zincir.
- Rehber RNA hedef DNA ipliğiyle eşleşirken, karşı DNA ipliği de bu yapının içinden geçirilir ve ortaya üç ipliğin ortak bir sarmal adımı paylaştığı bir yapı çıkar. Yazarlar buna "geometrik üçlü sarmal" diyor.
- Protein DNA'ya bağlandığında filament sıkışır: sarmal adımı yaklaşık 72 ångströmden 66 ångströme iner, periyodiklik altı alt birimden beşe düşer.
- Toplam 21 farklı yapısal durum çözülmüş; en yüksek çözünürlük 2,7 ångström.
Bir terim uyarısı. "Üçlü sarmal" (triplex) denince moleküler biyolojide genellikle Hoogsteen tipi baz eşleşmelerinin kurduğu klasik yapı anlaşılır. Buradaki yapı o değildir: yazarlar bunu geometrik üçlü sarmal olarak adlandırıyor ve Hoogsteen eşleşmesi tanımlamıyorlar. Üç iplik, protein tarafından bir arada tutulan ortak bir geometride bulunuyor. Bu ayrım, yazıyı aktaranların sıklıkla karıştırdığı bir noktadır.
Neden her üçüncü baz? Sorunun en zarif cevabı
"İki oku, bir atla" mantığı ilk bakışta bir kusur gibi görünür — neden bir sistem bilginin üçte birinden gönüllü olarak vazgeçsin? Makalenin cevabı, bu yazının en akıllıca kısmıdır.
Genetik kodun üçüncü harfi. DNA'daki genler üçlü harf gruplarıyla (kodon) okunur ve her kodon bir amino aside karşılık gelir. Genetik kodda bir "gevşeklik" vardır: kodonun üçüncü harfi çoğu zaman değişse bile amino asit değişmez. Buna salınım (wobble) pozisyonu denir. Yani bir virüs, kodonun üçüncü harfini bedava değiştirebilir — proteini bozulmaz ama DNA dizisi değişmiş olur.
İşte kilit bulgu: Doğal VIPR sistemlerinde atlanan baz, genellikle tam olarak kodonun salınım pozisyonuna denk geliyor.
Bunun anlamı şu: klasik bir CRISPR sistemini atlatmak isteyen virüs, hedeflenen bölgede eş anlamlı kodon değişiklikleri yapar — proteini aynı kalır, ama rehber RNA artık eşleşmez ve virüs kurtulur. Bu, virüslerin bilinen en ucuz kaçış yoludur. VIPR ise tam olarak o pozisyona hiç bakmaz. Virüs o harfi istediği kadar değiştirsin, VIPR'ı yanıltamaz — çünkü VIPR zaten okumuyordu.
Yani bilgiden vazgeçiş bir kusur değil, bir kaçış-önleme stratejisidir. Sistem, düşmanın bedavaya değiştirebildiği harfi kasten görmezden geliyor.
Burada yaygın bir yanlış aktarımı düzeltmek gerekiyor. Bu özellik sıklıkla "VIPR tam eşleşme gerektirmez, uyumsuzluklara toleranslıdır" diye anlatılıyor. Bu ifade yanlıştır.
Doğrusu şudur: VIPR her üçüncü bazı hiç okumaz — bu tasarım gereği bir körlüktür, tolerans değil. Buna karşılık okuduğu pozisyonlarda esneklik yoktur: makaledeki deneylerde vrRNA'nın NN eşleşmelerini bozmak ya da GGY motiflerini değiştirmek işlevi tamamen ortadan kaldırmıştır, ve yalnız "bir baz atlamalı" hedef dizisi baskılama üretmiştir.
Üstelik makalelerde uyumsuzluk toleransını ölçen bir deney yoktur: kaç NN uyumsuzluğuna kadar bağlanmanın sürdüğünü gösteren bir titrasyon ya da hedef dışı etki profili bildirilmemiştir. Bu, sistemi araç olarak kullanmak isteyenler için önemli bir boşluktur.
Asıl iddia: bu bir virüs silahı
Buraya kadar anlatılanlar yeni bir moleküler mekanizmadır. Makalelerin evrimsel iddiası ise bundan ayrı ve daha büyüktür: VIPR bakterilerin değil, virüslerin sistemidir ve birbirlerine karşı kullanılır.
Kanıt 1: nerede bulunuyorlar?
| Konum | Oran |
|---|---|
| Provirüs genomları (bakteri genomuna yerleşmiş virüsler) | %56 |
| Virüs genomları | %14,8 |
| Prokaryot kromozomları | %25,5 |
| Plazmitler | %3,8 |
| Toplam viral / proviral: yaklaşık %71 | |
Yedi farklı VIPR tipi tanımlanmış (I–VII); ayrımlar Vipr protein filogenisine, vrRNA mimarisine ve yanındaki yardımcı genlere dayanıyor.
Kanıt 2: neyi hedefliyorlar?
Asıl belirleyici kanıt burada. Araştırmacılar doğal vrRNA'ların hedef dizilerini biyoinformatik olarak tahmin etmiş ve nereye baktıklarına bakmışlar:
| Sistem | Bulgu |
|---|---|
| SUSP1 VIPR kladı SUSP1: bir Escherichia fajı |
20 vrRNA hedefinin 18'i, SUSP1'i büyük olasılıkla parazitleyen bir uydu faja yöneliyor |
| Pseudomonas fulva VIPR kladı | 66 hedefin 48'i bakterideki yerleşik provirüslere; bunların 36'sı tek bir provirüs bölgesine yoğunlaşıyor |
Üstelik hedeflerin türü de anlamlı: vrRNA'lar ağırlıklı olarak virüslerin "saklanayım mı, yoksa hemen öldüreyim mi" kararını veren düğme genlerine (cro ve cI) yöneliyor. Yani hedef rastgele bir yer değil, rakip virüsün yaşam döngüsünün anahtarı.
Ve karşılıklılık: Bazı uydu fajların kendi vrRNA'ları vardır ve bunlar başka yakın akraba uydu fajları hedefler. Hatta bazı vrRNA'lar doğrudan başka VIPR sistemlerini hedeflemektedir. Yazarların ifadesiyle: "VIPR, fajlar arası çatışmada hem kılıç hem kalkan olarak iş görür."
Burada anlatılan şey, bakteri–virüs savaşı değil; bir bakteri hücresinin içindeki virüsler arası bir silahlanma yarışıdır.
Önerilen köken senaryosu
| Adım | Ne oluyor |
|---|---|
| 1 | Virüsler, rakip virüsleri susturmak için VIPR benzeri sistemler geliştirir. Bu, RNA rehberli DNA tanımanın ilk biçimidir |
| 2 | Bakteriler bu sistemi ele geçirir ve kendi savunmaları için kullanmaya başlar. Yazarların cümlesi net: "prokaryotlar ilk CRISPR sistemini yaratmak için viral bir proteini kaçırmıştır" |
| 3 | Savunma amaçlı VIPR'ın, Cas1 benzeri bir transpozazla eşleşmesi kalıtsal bağışıklık hafızasını mümkün kılar — yani "arananlar listesi"ni tutma yeteneğini. İlk CRISPR sistemi böyle doğar |
| 4 | Atasal RAMP proteininin çoğalıp çeşitlenmesi, Sınıf 1 CRISPR'ın uzmanlaşmış RAMP'larını (Cas5, Cas6, Cas7) üretir |
Objektif değerlendirme: bu iddia ne kadar sağlam?
Mekanizma ile köken iddiasını ayırmak şart. Kesintili kod, üçlü sarmal yapısı, PAM gerekmemesi, kesmeden baskılama ve salınım pozisyonu içgörüsü — bunların hepsi doğrudan deneysel ve yapısal verilerle gösterilmiştir ve sağlamdır. "Virüsler önce geldi, bakteriler çaldı" iddiası ise filogenetik bir çıkarımdır ve farklı bir kanıt kategorisidir.
1. Kök belirleme sorunu
İddianın omurgası şudur: Vipr proteini, tüm CRISPR RAMP'larından daha erken dallanıyor ve ağırlıklı olarak virüslerde bulunuyor. Buradan "demek ki önce virüslerde vardı" sonucu çıkarılıyor.
Ama bu çıkarımın klasik bir alternatifi vardır: virüsler bu proteini konaktan almış ve çok hızlı değiştirmiş olabilirler. Faj genleri konak genlerinden çok daha hızlı evrimleşir; hızlı evrimleşen bir dal, filogenetik ağaçta yapay olarak "erken dallanmış" gibi görünür. Bu, faj–konak gen ağaçlarında bilinen bir yanılgı kaynağıdır.
Makalelerde bu ihtimali dışlayacak bir moleküler saat analizi ya da atasal dizi yeniden yapılandırması bulunmamaktadır. "Viral ve erken dallanan" gözlemi, viral köken hipoteziyle uyumludur — ama tek açıklama değildir.
2. Cas1 adımı deneysel değil
Senaryonun en kritik halkası, VIPR benzeri bir sistemin Cas1 benzeri bir transpozazla eşleşerek hafıza kazanmasıdır — yani CRISPR'ı CRISPR yapan adım. Bu adım için hiçbir deneysel gösterim yoktur; bir öneridir.
Ayrıca makalelerde kaspozonlardan (casposon) hiç söz edilmiyor. Bu dikkat çekicidir: CRISPR'ın hafıza modülünün (Cas1) nereden geldiğine dair bugüne kadarki yerleşik açıklama kaspozon hipotezidir. Yeni bir köken senaryosu öneren bir çalışmanın, mevcut açıklamayla nasıl uzlaştığını tartışmaması bir boşluktur.
3. Hedef tahminleri biyoinformatiktir
"VIPR rakip fajları hedefliyor" sonucu, iki klad üzerindeki hesaplamalı hedef tahminlerine dayanıyor (18/20 ve 48/66). Bunlar ikna edici oranlardır, ama doğal ortamda bir VIPR sisteminin rakip bir fajı gerçekten bastırdığı gösterilmemiştir — deneysel gösterim laboratuvarda, yeniden programlanmış sistemlerle yapılmıştır. Ayrıca tüm vrRNA hedeflerinin genom genelinde ne kadarının viral, ne kadarının bakteri genine yöneldiğine dair toplu bir döküm verilmemiştir.
4. Özgüllük verisi eksik
Yukarıda da belirttiğimiz gibi: uyumsuzluk toleransı ölçülmemiş, hedef dışı bağlanma profili çıkarılmamıştır. Bir sistemi "programlanabilir araç" olarak sunmak için bu veriler gereklidir ve henüz yoktur.
5. Bağımsız değerlendirme henüz yok
Bu yazının hazırlandığı tarihte makaleler yayımlanalı bir gün olmuştu. Berkeley, IGI ya da HHMI'dan basın bülteni, herhangi bir haber kaynağında değerlendirme ya da adı belirtilmiş bir bilim insanından eleştiri bulunamadı. Şu an var olan tek bağımsız uzman yorumu, aynı sayıdaki Bravo değerlendirmesidir; o metne de erişemedik (yalnız başlığı, yazarı ve tek cümlelik tanıtımı doğrulanabildi). Yani bu çalışma henüz alanın süzgecinden geçmemiştir.
Laboratuvarda ne gösterildi?
Makalelerin deneysel kısmı E. coli bakterisinde yapılmış ve iki şeyi göstermiş: sistem çalışıyor ve yeniden programlanabiliyor.
| Deney | Sonuç |
|---|---|
| Doğal hedefler | Her vrRNA, tahmin edilen hedefi bir GFP (yeşil floresan protein) geninin önüne konduğunda o geni susturdu |
| İplik bağımsızlığı | dCas9 temelli CRISPRi'den farklı olarak, hem kodlayan hem kalıp ipliği hedeflemek susturma üretti — bu, hedeflenebilecek alanı genişleten önemli bir pratik avantajdır |
| Yeniden programlama | Dört vrRNA'dan üçü, promotöre yakın yeni pozisyonlara yönlendirildiğinde GFP'yi etkili biçimde baskıladı. Yeniden programlamak için yalnız NN dinükleotitlerini değiştirmek yeterli |
| Özgüllük kontrolü | Yalnız "bir baz atlamalı" hedef dizisi baskılama üretti; vipr genini silmek ya da GGY/NN yapısını bozmak susturmayı tamamen ortadan kaldırdı |
| Faj savunması | cro genini hedefleyen rehberler, lambda fajının plak oluşturma verimini beş kat büyüklük mertebesinde (10⁵ kat) düşürdü ve sıvı kültürde bağışıklık sağladı |
| Yardımcı gen katkısı | SUSP1 VIPR operonundan vap1 genini birlikte ifade etmek korumayı daha da artırdı |
| Yaşam döngüsü kontrolü | cI hedefleyen vrRNA'lar, gizlenmiş fajın uyanmasını tetikledi; cro hedefleyen ve hedefsiz kontroller tetiklemedi |
10⁵ katlık faj koruması, kesme olmadan sağlanmıştır. Sistem virüsün DNA'sını parçalamadı; yalnızca kritik bir genin okunmasını engelledi. Bu, "DNA'yı kesmeden virüsü etkisiz hale getirmek" fikrinin çalışabileceğini gösteriyor ve makalenin en somut deneysel katkısıdır.
Doğrulanamadı: GFP baskılamasının kaç kat olduğu sayısal olarak bildirilmemiş, yalnız niteliksel olarak ("susturdu", "baskıladı") ifade edilmiştir. Ayrıca Vipr proteininin nükleaz etkinliğinin laboratuvarda doğrudan test edilip edilmediği net değildir; kesme yapmadığı, dizi ve yapı analizi ile transkripsiyonel etkiden çıkarsanmış görünmektedir.
Tıp için ne anlama gelebilir?
Bu bir temel bilim makalesidir ve hiçbir tıbbi uygulaması yoktur. Ama CRISPR'ın kendisi de on beş yıl önce böyle başlamıştı; dolayısıyla neyin ilgi çekici olduğunu görmekte yarar var.
Kesmeden susturmak
Gen tedavisinin en büyük endişesi, DNA'yı kesmenin yanlış yerde onarım hatalarına ve istenmeyen değişikliklere yol açmasıdır. Kesmeden çalışan bir sistem bu riski baştan ortadan kaldırır. Bugün de bunun için "ölü" Cas9 (dCas9) kullanılır, ama VIPR bu işi doğuştan yapan bir yapıdır.
PAM kısıtının kalkması
CRISPR ile bir geni hedeflemek istediğinizde, uygun bir PAM dizisinin yakında bulunması gerekir; bu, hedeflenebilecek noktaları ciddi biçimde sınırlar. VIPR'da böyle bir kısıt görünmüyor — teorik olarak genomun herhangi bir noktası hedeflenebilir.
Her iki ipliği hedefleyebilme
dCas9 temelli baskılamada genellikle belirli bir iplik hedeflenmek zorundadır. VIPR'da her iki iplik de işe yaramıştır. Bu, tasarım özgürlüğünü artıran pratik bir avantajdır.
Ama şunları da söylemek gerekir. VIPR bir bakteride, plazmit üzerinde, bakteri geni ve faj hedefiyle çalıştırılmıştır. İnsan hücresinde denenmemiştir. Sistem tek bir protein değil, onlarca alt birimden oluşan uzun bir filamenttir — bu, gen tedavisinde kullanılan taşıyıcılara sığdırmayı çok zorlaştırır (Cas9'un bile boyutu bu açıdan sorun çıkarmaktadır). Hedef bölgenin 27–48 baz çifti gibi uzun olması da başka bir kısıttır. Ve en önemlisi: hedef dışı etki profili hiç çıkarılmamıştır. Bu haliyle VIPR bir araç değil, araç olma potansiyeli taşıyan bir bulgudur.
Kanser açısından uzak ama gerçek bir bağ: CRISPR bugün onkolojide iki yerde kullanılıyor — bağışıklık hücrelerini laboratuvarda yeniden programlayarak CAR-T gibi hücresel tedaviler üretmekte, ve kanser biyolojisini anlamak için genleri tek tek kapatıp ne olduğuna bakan tarama çalışmalarında. Kesmeden ve PAM kısıtı olmadan gen ifadesini susturabilen bir sistem, özellikle ikinci alanda — yani hangi genin kanser hücresi için vazgeçilmez olduğunu bulmakta — yeni bir araç olabilir. Bu bir öngörüdür, bir vaat değil.
Sık sorulan sorular
- "CRISPR'ın kökeni bulundu" demek doğru mu?
- Kısmen. Bu çalışma Sınıf 1 CRISPR sistemlerinin — yani çok alt birimli Cascade/Csm ailesinin — kökenine dair bir model öneriyor. Gen düzenlemede kullandığımız Cas9 ve Cas12 ise Sınıf 2'dir ve onların kökeni ayrı bir hikâyedir (hareketli genetik elemanlardaki TnpB ve IscB proteinleri). Bu çalışma o hikâyeyi ne doğruluyor ne çürütüyor. Eşlik eden yorumun alt başlığı bile "sınıf 1" diyerek kapsamı açıkça daraltıyor.
- VIPR DNA'yı kesiyor mu?
- Hayır. Vipr proteininin kendisinin kesme etkinliği yoktur. Hedef DNA'ya bağlanıp o bölgenin okunmasını fiziksel olarak engeller. Bazı VIPR tiplerinin yanında nükleaz ya da helikaz kodlayan yardımcı genler bulunur, ama ana iş kesmek değil susturmaktır. Deneyde faja karşı 10⁵ katlık koruma, hiç kesme olmadan sağlanmıştır.
- VIPR'ın PAM dizisine ihtiyacı yok mu? Bu neden önemli?
- Evet, yok — bu makalede açıkça belirtiliyor ve yapı çalışması da destekliyor: Vipr proteini hedef DNA ile hiçbir baza özgü temas kurmuyor, özgüllüğün tamamını rehber RNA belirliyor. Önemi şu: CRISPR ile bir yeri hedeflemek istediğinizde yakınında uygun bir PAM dizisi bulunmak zorundadır ve bu, hedeflenebilecek noktaları ciddi biçimde sınırlar. PAM kısıtının olmaması, teorik olarak genomun her noktasını hedeflenebilir kılar.
- "Tam eşleşme gerekmiyor" doğru mu?
- Bu ifade yanlıştır ve düzeltilmesi gerekir. VIPR her üçüncü bazı hiç okumaz — bu tasarım gereği bir körlüktür, uyumsuzluğa tolerans değil. Okuduğu pozisyonlarda ise esneklik yoktur: deneylerde NN eşleşmelerini bozmak işlevi tamamen ortadan kaldırmıştır. Ayrıca makalelerde uyumsuzluk toleransını ölçen bir deney bulunmamaktadır.
- Peki neden her üçüncü bazı atlıyor?
- Çünkü genetik kodda kodonun üçüncü harfi çoğu zaman değişse bile üretilen amino asit değişmez — buna "salınım pozisyonu" denir. Virüsler klasik CRISPR'dan kaçmak için tam olarak bu harfi bedavaya değiştirirler. VIPR'da atlanan baz genellikle bu pozisyona denk geliyor; yani sistem, düşmanın serbestçe değiştirebildiği harfi kasten görmezden geliyor. Bilgiden vazgeçiş bir kusur değil, bir kaçış-önleme stratejisi.
- Bakteriler CRISPR'ı virüslerden mi çaldı?
- Makalelerin önerdiği senaryo bu ve yazarların kendi cümlesi net: "prokaryotlar ilk CRISPR sistemini yaratmak için viral bir proteini kaçırmıştır." Ama bu bir çıkarımdır, deneysel bir gösterim değil. Dayanağı, Vipr proteininin filogenetik ağaçta erken dallanması ve sistemlerin %71'inin viral/proviral genomlarda bulunmasıdır. Alternatif bir açıklama da mümkündür: virüsler bu proteini konaktan almış ve çok hızlı değiştirmiş olabilirler — hızlı evrimleşen dallar ağaçta yapay olarak "erken" görünür.
- Bu bulgu gen tedavisini değiştirir mi?
- Yakın gelecekte hayır. Sistem yalnız bakteride denenmiştir, insan hücresinde test edilmemiştir. Tek bir protein değil onlarca alt birimlik bir filament olduğu için gen tedavisi taşıyıcılarına sığdırmak çok zordur. Hedef bölgesi uzundur ve hedef dışı etki profili hiç çıkarılmamıştır. Uzun vadede ilgi çekici kılan özellikleri ise gerçektir: kesmeden susturma, PAM kısıtının olmaması ve her iki ipliği hedefleyebilme.
- Bu, virüslerin bakterilere karşı değil birbirine karşı savaştığı anlamına mı geliyor?
- Bir bakteri hücresinin içinde birden fazla virüs ve virüs benzeri eleman bulunabilir ve bunlar aynı kaynaklar için rekabet eder. Makalede gösterilen şey tam olarak bu: bir fajın VIPR sistemi, kendisini parazitleyen bir "uydu faja" yöneliyor; hedefler rakip virüsün yaşam döngüsü anahtarı olan genler. Hatta bazı vrRNA'lar doğrudan başka VIPR sistemlerini hedefliyor. Yazarların ifadesiyle sistem "hem kılıç hem kalkan".
- Bu sonuçlara ne kadar güvenebiliriz?
- İkiye ayırmak gerekir. Mekanizma — kesintili kod, üçlü sarmal yapısı, PAM gerekmemesi, kesmeden baskılama, faja karşı koruma — doğrudan deneysel ve yapısal verilerle gösterilmiştir; 21 farklı yapısal durum çözülmüştür. Bu kısım sağlamdır. Köken iddiası ise filogenetik bir çıkarımdır ve bağımsız doğrulama beklemektedir. Ayrıca makaleler yayımlanalı henüz çok kısa süre olduğu için alanın değerlendirmesi de oluşmamıştır.
- "Geometrik üçlü sarmal" ne demek?
- Üç DNA/RNA ipliğinin ortak bir sarmal geometride bir arada bulunması. Klasik üçlü sarmaldan farkı şu: moleküler biyolojide "triplex" denince genellikle Hoogsteen tipi baz eşleşmelerinin kurduğu yapı anlaşılır. Buradaki yapıda yazarlar Hoogsteen eşleşmesi tanımlamıyor; üç iplik protein filamenti tarafından ortak bir geometride tutuluyor. Bu ayrım aktarımlarda sıklıkla karıştırılıyor.
Terimler sözlüğü
- CRISPR-Cas
- Bakteri ve arkelerin virüslere karşı kullandığı, RNA rehberli bir tür kazanılmış bağışıklık sistemi. Gen düzenleme teknolojisinin temelidir.
- Cas proteinleri
- CRISPR sisteminde iş gören proteinler. Cas9 ve Cas12 DNA keser; Cas1 yeni dizileri arşive ekler (hafıza).
- Sınıf 1 / Sınıf 2 CRISPR
- Sınıf 1 sistemler çok sayıda proteinden oluşan kompleksler kullanır (Cascade, Csm); doğada çok daha yaygındır. Sınıf 2 sistemler tek büyük protein kullanır (Cas9, Cas12) ve gen düzenlemede kullanılanlar bunlardır.
- Rehber RNA
- Proteine hangi DNA dizisini hedefleyeceğini söyleyen RNA molekülü. Gen düzenlemenin "adres etiketi"dir.
- PAM (protospacer adjacent motif)
- CRISPR sistemlerinin hedefin hemen yanında aradığı kısa dizi. Hem sistemin kendi genomunu kesmesini önler hem de hedeflenebilecek noktaları sınırlar. VIPR'da yoktur.
- VIPR
- Viral Interference Programmable Repeat. Bu çalışmada tanımlanan, ağırlıklı olarak virüslerde bulunan ve DNA'ya bağlanıp gen ifadesini susturan RNA rehberli sistem.
- Vipr proteini
- VIPR sisteminin ana proteini. RAMP ailesinin ilkel bir üyesidir ve bilinen tüm CRISPR RAMP'larından daha erken dallanır. DNA kesme etkinliği yoktur.
- vrRNA
- VIPR'ın rehber RNA'sı. Art arda 9–16 kez tekrarlanan, sabit GGY motifi ile değişken NN dinükleotidinden oluşan bir yapıdadır. Hedefi yalnız NN kısımları belirler.
- RAMP
- Repeat-Associated Mysterious Protein. Sınıf 1 CRISPR komplekslerini oluşturan protein ailesi (Cas5, Cas6, Cas7). Vipr bu ailenin en eski görünen üyesidir.
- Kesintili (noncontiguous) kod
- Rehber RNA'nın hedefle harf harf değil, aralıklı olarak eşleşmesi. VIPR'ın tanımlayıcı özelliğidir: iki baz okunur, biri atlanır.
- Kodon ve salınım (wobble) pozisyonu
- Genler üçlü harf grupları (kodon) halinde okunur. Kodonun üçüncü harfi çoğu zaman değişse de üretilen amino asit değişmez; bu pozisyona salınım pozisyonu denir. Virüsler için "bedava mutasyon" alanıdır.
- Faj (bakteriyofaj)
- Bakterileri enfekte eden virüs. Doğadaki en bol biyolojik varlıklardan biridir.
- Provirüs / profaj
- Bakterinin kendi genomuna yerleşmiş, uykuda bekleyen virüs. Uygun koşulda uyanıp hücreyi öldürebilir.
- Uydu faj
- Kendi başına çoğalamayan, çoğalmak için başka bir faja parazitlenen virüs benzeri eleman. VIPR hedeflerinin önemli bir kısmı bunlardır.
- Kriyo-elektron mikroskobu
- Molekülleri dondurup elektron demetiyle görüntüleyerek atom düzeyinde yapı çıkarma yöntemi. Bu çalışmada 21 farklı yapısal durum çözülmüştür.
- dCas9 / CRISPRi
- Kesme yeteneği devre dışı bırakılmış Cas9'un, DNA'ya bağlanıp gen ifadesini susturmak için kullanılması. VIPR'ın doğal olarak yaptığı işin laboratuvarda üretilmiş karşılığıdır.
DROZDOGAN Akademi Yorumu
Bu, onkoloji yazısı değil — ama gen düzenlemenin kanser tedavisindeki yeri düşünülünce, temelini anlamakta yarar var. Ve burada gerçekten güzel bir bilim var: bir sistemin neden bilginin üçte birinden vazgeçtiğini açıklayan tek bir cümle, tüm bulguyu anlamlı kılıyor.
⚡ Bu çalışma neden önemli
İki nedenle. Birincisi mekanizma: doğada bugüne kadar bilinen bütün RNA rehberli sistemler hedefi kesintisiz okurdu. VIPR "iki oku, bir atla" ritmiyle çalışıyor ve bu, bilgi kodlamanın daha önce tanımlanmamış bir mantığı. İkincisi hikâye: CRISPR'ın bakterilerin icadı olduğunu düşünüyorduk; bu çalışma onu virüslerin birbirine karşı geliştirdiği bir silahtan türemiş olabileceğini öne sürüyor. Doğruysa, bağışıklığın kökeninde savunma değil saldırı var demektir.
✅ Güçlü olan taraf
Mekanizma kısmı çok sağlam kurulmuş: kriyo-elektron mikroskobuyla 21 ayrı yapısal durum, 2,7 ångströme kadar çözünürlük, ve filamentin DNA'ya bağlanınca sıkışmasının ölçülmesi. Deneysel taraf da temiz: faja karşı 10⁵ katlık koruma, üstelik hiç DNA kesmeden. Ama asıl zarif olan salınım pozisyonu içgörüsüdür: atlanan bazın, virüsün bedavaya değiştirebildiği harfe denk gelmesi, "neden bu kadar tuhaf bir kod?" sorusunun cevabını tek hamlede veriyor. İyi bilim böyle görünür.
⚠️ Sınırlar ve dikkat edilmesi gerekenler
Mekanizma ile köken iddiasını karıştırmamak gerekiyor. "Virüsler önce geldi" sonucu, filogenetik bir ağaç ile genom konumu istatistiğine dayanıyor — ve fajlardaki genler hızlı evrimleştiği için ağaçta yapay olarak "erken dallanmış" görünebilirler. Senaryonun en kritik halkası olan Cas1 eşleşmesi tamamen öneridir, deneysel gösterimi yoktur; üstelik makaleler hafıza modülünün kökenine dair mevcut açıklamayı (kaspozon hipotezi) hiç tartışmıyor. Kapsam da sanıldığından dardır: iddia Sınıf 1 CRISPR içindir; Cas9 ve Cas12'nin kökeni bu çalışmanın konusu değildir. Son olarak özgüllük verisi yok — uyumsuzluk toleransı ölçülmemiş, hedef dışı profil çıkarılmamıştır.
🩺 Pratikte ne yapılmalı
1. Bu bulgunun bugün hiçbir klinik karşılığı yoktur; bir hastaya anlatırken bunu açıkça belirtin.
2. "CRISPR'ın kökeni bulundu" başlıklarını okurken hangi sınıf olduğunu sorun — Cas9 ve Cas12 bu hikâyenin dışındadır.
3. "Tam eşleşme gerekmiyor" ifadesini kullanmayın; doğrusu "her üçüncü baz hiç okunmuyor"dur ve bu tolerans değil, tasarlanmış körlüktür.
4. PAM gerekmemesi ve iki ipliği de hedefleyebilme, araç geliştirme açısından gerçek avantajlardır — ama sistem onlarca alt birimlik bir filamenttir ve gen tedavisi taşıyıcılarına sığdırmak ayrı bir sorundur.
5. Bir günlük bir yayına kesin gözüyle bakmayın; alanın değerlendirmesi henüz oluşmadı.
❓ Henüz cevabı olmayan sorular
Vipr gerçekten atasal mı, yoksa hızlı evrimleşmiş bir konak geni mi — bunu ayırt edecek moleküler saat analizi ve atasal dizi yeniden yapılandırması yapılmadı. VIPR benzeri bir sistemin Cas1 ile eşleşip hafıza kazanması laboratuvarda gösterilebilir mi? Doğal ortamda bir VIPR sistemi gerçekten rakip bir fajı bastırıyor mu — bu şu an yalnız hesaplamalı bir tahmin. Kaç uyumsuzluğa kadar sistem çalışmaya devam eder? Ve en merak edilen: insan hücresinde çalışır mı, çalışırsa hedef dışı etkisi ne olur? Bunların hiçbirinin bugün cevabı yok.
Kısa hükmümüz: Mekanizma tarafı güçlü, yeni ve zarif; doğada bilinmeyen bir kodlama mantığı gösterilmiş ve deneysel olarak çalıştırılmıştır. Köken iddiası ise ilgi çekici ama henüz bir hipotezdir ve bağımsız doğrulama bekler. Bu ayrımı korumak koşuluyla, yılın en dikkat çekici temel bilim bulgularından biri sayılabilir.
Şeffaflık notu. Bu yazının dayandığı iki araştırma makalesi ile eşlik eden yorum Science dergisinde yayımlanmıştır ve üçünün de yayımlanmış tam metnine erişilememiştir (dergi ödeme duvarı arkasındadır). Mekanizma, yapı, filogeni ve deney sonuçlarına ilişkin tüm ayrıntılar, aynı çalışmanın Nisan 2026 tarihli açık erişimli ön baskılarından (bioRxiv) alınmıştır. Ön baskılar hakem değerlendirmesinden geçip revize edilerek yayımlandığı için, yayımlanmış sürümdeki sayılar ve ifadeler farklılaşmış olabilir. Yazının başındaki künye bilgileri (cilt, sayı, sayfa, DOI) yayımlanmış sürüme aittir.
Eşlik eden Bravo değerlendirmesinin metnine erişilememiştir; yalnız başlığı, yazarı, sayfa numarası ve tek cümlelik tanıtımı doğrulanabilmiştir. Bu nedenle bu bağımsız uzman yorumunun hangi çekinceleri dile getirdiği bu yazıya yansımamıştır — ve şu an var olan tek bağımsız değerlendirme odur.
Hedef uzunluğu ve okunan baz sayısı hesabı bize aittir; makalelerde tekrar sayısı ve RNA–DNA oranı verilmekte, ancak hedef uzunluğu ya da Cas9 ile sayısal özgüllük karşılaştırması yapılmamaktadır. Aynı şekilde, kök belirleme yanılgısı, kaspozon hipotezinin tartışılmaması ve özgüllük verisinin eksikliği başlıklarındaki eleştiriler bize aittir; makalelerde bu biçimde ele alınmamıştır.
Doğrulanamayanlar: GFP baskılamasının kaç kat olduğu; Vipr proteininin nükleaz etkinliğinin laboratuvarda doğrudan test edilip edilmediği; uyumsuzluk toleransının sayısal sınırı ve hedef dışı bağlanma profili; yedi VIPR tipinin tek tek sayıları ve konak organizma listesi; vrRNA hedeflerinin genom genelinde viral ve bakteriyel dağılımı. Bu yazının hazırlandığı tarihte makaleler yayımlanalı bir gün olmuştu; herhangi bir kurumdan basın bülteni, haber kaynaklarında değerlendirme ya da adı belirtilmiş bir bilim insanından eleştiri bulunamamıştır.
Bu yazı temel bilim alanında bir bilgilendirmedir. Anlatılan sistemin hiçbir tıbbi uygulaması yoktur, insan hücresinde denenmemiştir ve herhangi bir tedavi ya da tanı yöntemiyle ilişkilendirilmemelidir.
Kaynaklar
- Yoon PH, Loi KJ, Zhang ZT, Docter TA, Lopez SC, Langeberg CJ, ve ark., Doudna JA. A noncontiguous code for RNA-guided DNA recognition at the origin of CRISPR-Cas. Science. 2026;393(6817):1230-1235. DOI 10.1126/science.aei0498.
- Yoon PH, Docter TA, Zhang ZT, Loi K, Lopez SC, Valentin-Alvarado LE, Tuck OT, Brohawn SG, Doudna JA. VIPR RNA-guided DNA recognition by noncontiguous geometric triplex formation. Science. 2026;393(6817):1236-1240. DOI 10.1126/science.aei3472.
- Bravo JPK. A viral origin for RNA-guided immunity. Science. 2026;393(6817):1187-1188. DOI 10.1126/science.ael0758.
- A noncontiguous code for RNA-guided DNA recognition preceded CRISPR. bioRxiv ön baskısı, Nisan 2026 (açık erişim).
- Triplex formation drives noncontiguous VIPR RNA-guided DNA recognition. bioRxiv ön baskısı, Nisan 2026 (açık erişim).
- Jinek M, Chylinski K, Fonfara I, Hauer M, Doudna JA, Charpentier E. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337:816-821.
- Makarova KS, Wolf YI, Koonin EV, ve ark. Evolutionary classification of CRISPR-Cas systems.
- Karvelis T, Siksnys V, ve ark. TnpB proteinlerinin Cas12 atası olarak tanımlanması.
- Altae-Tran H, Zhang F, ve ark. IscB ve ωRNA sistemleri: Cas9'un atası.
- Krupovic M, Koonin EV. Kaspozonlar ve CRISPR adaptasyon modülünün kökeni.