
Как раковые клетки общаются друг с другом — сложность рака

Клетки для общения и связи друг с другом создают сигнальные сети . Они передают важную информацию для синтеза белка, клеточной архитектуры, дифференцировки и апоптоза (запрограммированной смерти). Внутриклеточные сети также интегрируют и распределяют информацию и отвечают на стимулы. Их открытие сильно повлияло на понимание и лечение раковых клеток.
Раковые клетки возникают вследствие происходящих в сигнальных сетях мутаций . Поэтому они избегают многих защитных механизмов организма и самостоятельно производят некоторые факторы, например фактор роста . Сигналы создаются белками и ферментами, поэтому при изучении раковых клеток рассматривают белковые взаимодействия . Первый открытый у человека протоонкоген (название генов, вызывающих рак вследствие мутации) — Src.
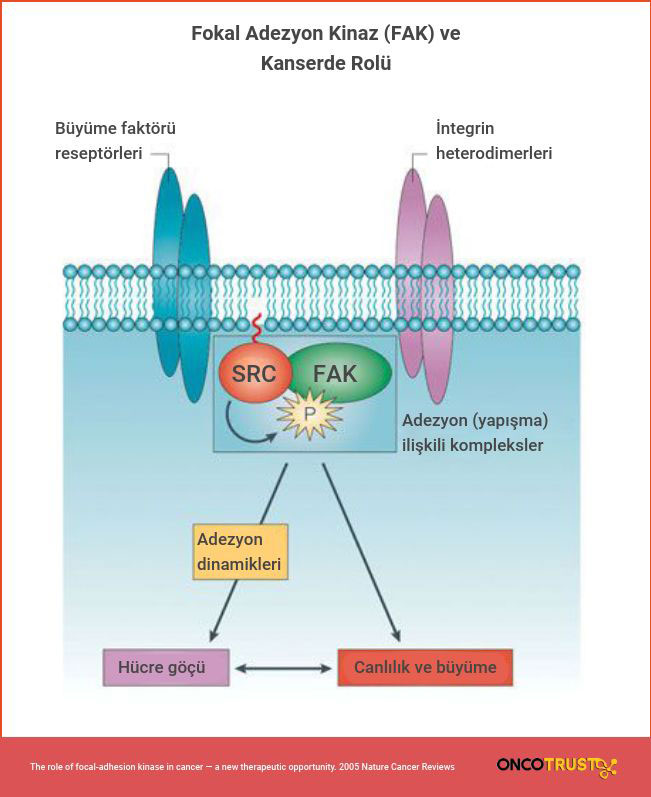
Открыта важная роль связи Src с FAK (киназой фокальной адгезии) в инвазии опухолевых клеток. Они — киназы движения клеток (ферменты, меняющие функцию белка добавлением фосфата). Иногда Src фосфорилирует FAK (присоединяет фосфатную группу к органической молекуле), создавая места стыковки сигнальных белков. Генетическая инактивация обеих нарушает подвижность. В некоторых инвазивных (метастатических) раках Src и FAK высоко экспрессированы (образуют продукты, например белки). Это подтверждает их роль в движении и инвазии.
Маргарет Фрейм изучила FAK в канцерогенезе и обнаружила определяющую роль уровня её белка в начале и прогрессировании раковых клеток. В той же работе добавление активной Src к неинвазивному (без метастазов) раку делало его инвазивным. Общий вывод других работ: Src поддерживает подвижность и рост опухоли множественными механизмами, большинство зависит от FAK (локальная активация RAC и фосфорилирование FISH независимы).

Другое взаимодействие — связь Ras-MAP. Она определяет мишени раковых клеток. Ras активируется мутациями и взаимодействует более чем с 20 эффекторами. Серин / треониновая Raf активирует MAP и RAF-MEK-ERK, необходимые для ряда онкогенных Ras-трансформаций (разрушения гена вследствие проникновения клетки в чужой ген). Пути имеют собственные субстраты (обрабатываемые ферментом вещества) и регулируются каркасными белками. MAP-киназный путь активирует транскрипции семейства Ets (перенос последовательности ДНК в РНК) и регулирует экспрессию множества генов. EphA2 с некоторыми ферментами снижает RAS дикого типа, регулируя не активированную мутацией RAS. Активация MAP важна для выживания опухоли. Сигналы MAP определяют новые мишени гену каспазы 9. Каспаза 9 блокирует некоторые противораковые факторы, подтверждая поддержку выживания связью Ras MAP через каспазу 9. Также p14 служит локализации активации MAP для ухода от некоторых опухолевых супрессоров.

PI3-киназа участвует в регуляции роста, подвижности и выживания клеток. PI3-киназа производит фосфоинозитиды, превращающие белки с липид-распознающими участками в мембрану. Контроль роста клеток PI3-киназой осуществляется цепью. Сначала PI3-киназа производит PDK1 и AKT. Затем AKT активирует mTOR-киназу. mTOR активирует трансляцию 2 способами. Первый — связанная с повышенной трансляцией 5-концевых олигопиримидиновых каналов (TOP) mRNA, кодирующих белки и другие компоненты аппарата трансляции, рибосомальная S6-протеинкиназа активируется, а ингибитор фактора инициации eIF4E — 4EBP-1 — инактивируется. Так PI3 регулирует клеточный рост. Akt и PI3 перестраивают ДНК- и РНК-связывающий белок YB-1. Мутантная форма YB-1 располагается в ядре вместо цитоплазмы и не блокирует трансформацию. Это позволяет раковым клеткам размножаться. Недавние исследования показывают регуляцию mTOR гормонами TSC-1 и TSC-2. Поскольку это ингибиторы роста и опухолевые супрессоры, их мутации могут вызывать склеротические (уплотнённые) опухоли других органов. Помимо влияния на рост PI3-киназа с Akt может поддерживать выживание раковых клеток и метастазы. PI3-киназа вместе с Akt, Mad3, Myc и s6-киназой опосредует вызванное Ras клеточное старение. Поэтому помимо вклада в рак она создаёт защитный контрольный механизм.

В семействе Rho GTPазы со своими активаторами и эффекторами могут вызывать рак. В норме они обеспечивают движение и размножение. Кроме них другие гены Rho встречаются при раках и необходимы для трансформации генов Rho, Rac, Ras, Cdc42. Ченнинг Дер изучил связь Rac и Ras с Tiam1. Rac GEF Tiam1 содержит Ras-связывающий участок. Мыши без Tiam1 устойчивы к Ras- и Rac-вызванным ракам. Работа показала онкогенность членов Rho. Независимый рост клеток рака поджелудочной с активной K-Ras зависит от активированной Ras и непрерывной экспрессии Tiaml. Другой пример — онкогенность PAR1, участвующего в Rho-зависимой трансформации. При сверхпродукции Par1 становится онкогеном, что зависит от RhoA. Rho также влияет на микротрубочки. С RhoA, RhoB, Erk, Map, Cdc42, mDia2, MTOC, ROCK и другими киназами участвует в движении и нацеливании клетки при раке. WAVE и Scar — каркасные белки, опосредующие воздействие GTPаз на актиновый цитоскелет. Они связывают GTPазы с комплексом Arp2 /3, регулирующим актиновые филаменты и инициирующим ветвление. Так WAVE помогает движению.
Многие подобные белковые взаимодействия участвуют в общении раковых клеток, придавая им свойства. Возможные мишени противораковых средств для некоторых мутантных генов активно изучают. Лучшее понимание сложных сигналов и связей белков даст новые методы лечения. Поскольку возрастёт понимание рака, терапия будет эффективнее, а выживаемость выше.
Эта статья была полезна?
Ваш отзыв помогает нам улучшать материалы.




Комментарии читателей
Оставьте комментарий
Ваше имя и комментарий публикуются только после одобрения администратором. Ваш адрес электронной почты никогда не показывается посетителям.
Будьте первым, кто оставит комментарий.